为什么你的Figure,总有一种“差点意思”的感觉?
本期跟大家分享的是发表在 Cancer Cell 上的题目为 Tumor cells metabolically resist immune-checkpoint therapy by macrophage efferocytosis-mediated fatty acid recycling 的研究型论文的排版和配色!
科研配色拆解见: 跟着顶刊学配色 108 | Cancer Cell

Liang Z, Long X, Xiong Z ...
Tumor cells metabolically resist immune-checkpoint therapy by macrophage efferocytosis-mediated fatty acid recycling
Cancer Cell, 44, 1235-1254.e11.
FIG. 1

Figure 1. ICB耐药肿瘤细胞脂肪酸利用增强与TREM2⁺ LAM在肿瘤微环境中积累相关
(A) Pembrolizumab治疗HCC患者肿瘤组织的单细胞RNA测序及应答与非应答肿瘤细胞差异通路分析。
(B) 脂肪酸介导能量产生的代谢途径示意图。
(C–E) Pembrolizumab治疗前后应答组和非应答组肿瘤细胞脂肪酸利用及相关基因表达分析。
(F–H) 免疫细胞单细胞分析及不同治疗阶段巨噬细胞亚群变化,重点分析TREM2⁺巨噬细胞。
(I) 肿瘤中TREM2⁺巨噬细胞比例与患者无进展生存和总体生存的关系。
(J) 不同巨噬细胞亚群中LAM相关基因表达分析。
(K) 不同细胞群脂肪酸转运、吞噬和凋亡细胞清除(efferocytosis)活性分析。
(L–M) 不同TREM2⁺ LAM富集状态下肿瘤细胞脂肪酸利用通量分析。
FIG 2
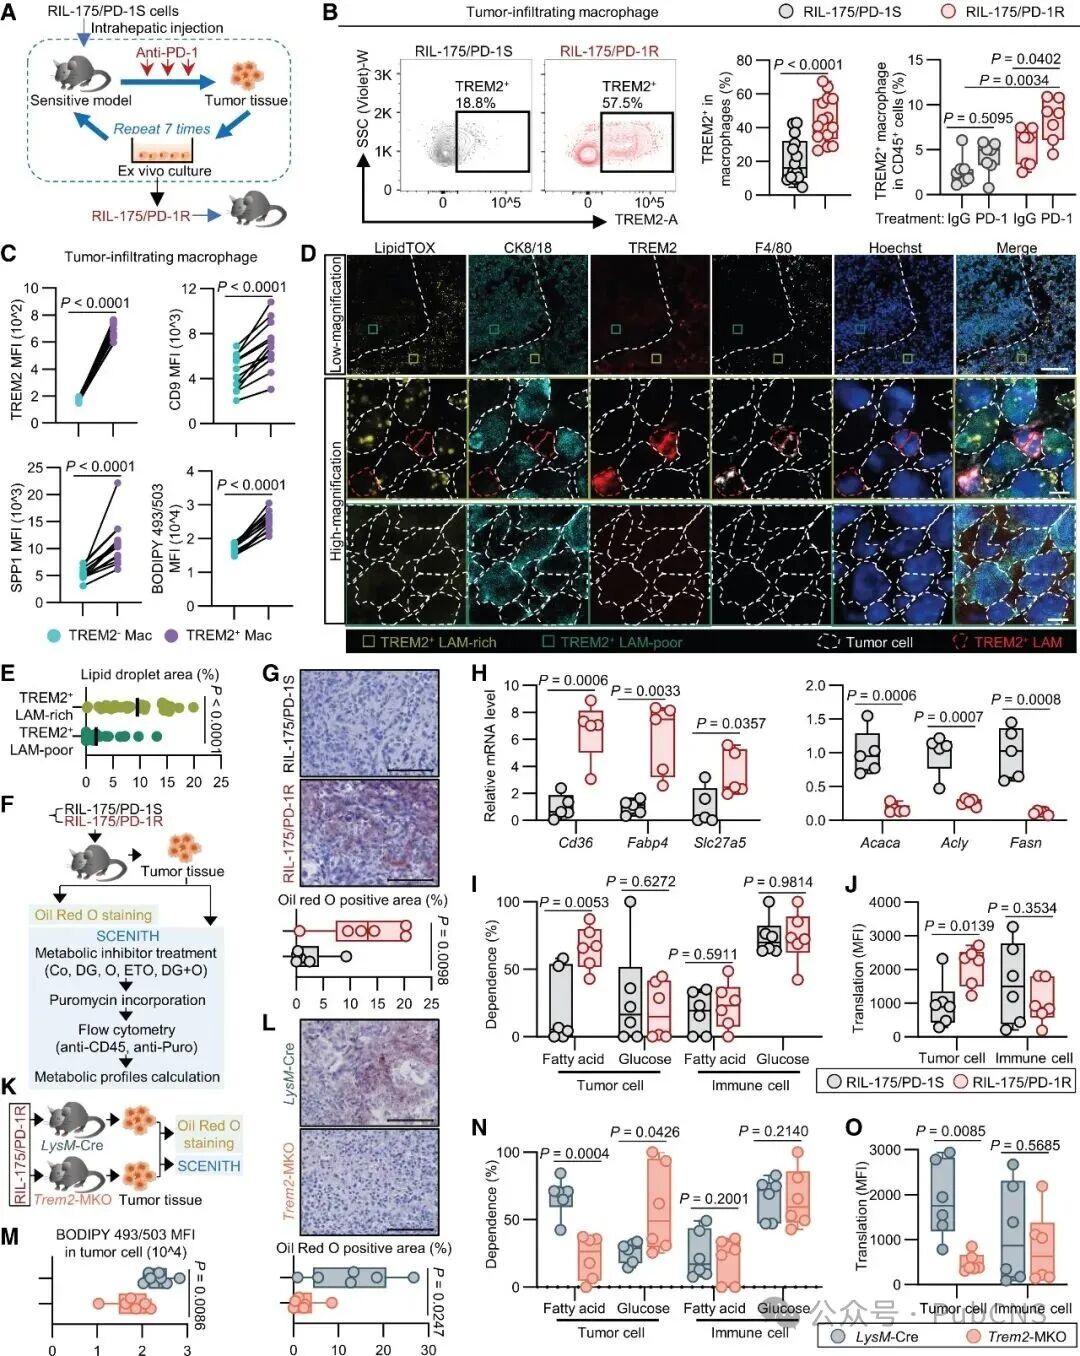
Figure 2. TREM2⁺ LAM调控ICB耐药HCC细胞的代谢依赖性
(A–B) RIL-175抗PD-1敏感和耐药HCC模型中TREM2⁺巨噬细胞的表达及比例分析。
(C) TREM2⁻和TREM2⁺巨噬细胞的TREM2、CD9、SPP1及脂滴水平比较。
(D–E) 肿瘤组织中TREM2⁺ LAM与脂滴富集的空间共定位分析。
(F–J) 抗PD-1敏感和耐药肿瘤的脂质代谢分析,包括脂质蓄积、脂肪酸利用及肿瘤细胞代谢依赖性。
(K–O) TREM2髓系细胞特异性敲除后肿瘤脂质蓄积及肿瘤细胞脂肪酸、葡萄糖代谢依赖性变化。
FIG 3
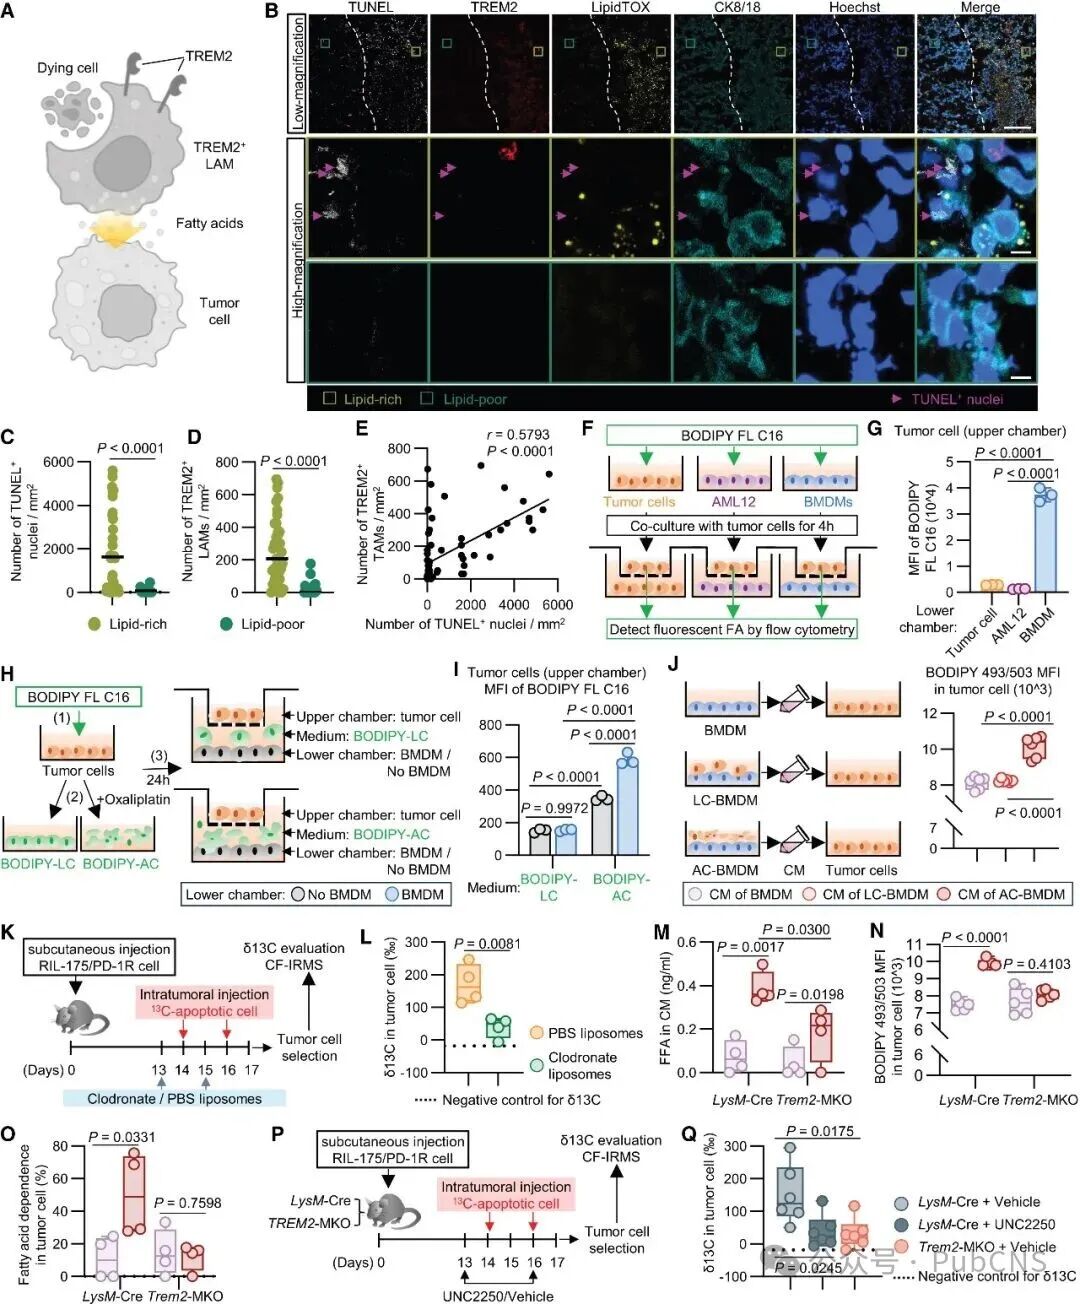
Figure 3. TREM2⁺ LAM通过凋亡细胞清除促进肿瘤细胞脂肪酸积累及代谢依赖
(A) TREM2⁺ LAM通过回收死亡细胞来源脂肪酸促进肿瘤细胞脂质积累的模型。
(B–E) 肿瘤组织中死亡细胞与TREM2⁺ LAM及脂质富集区域的空间关系分析。
(F–J) 肿瘤细胞与BMDMs共培养及脂肪酸示踪实验,分析巨噬细胞介导的脂肪酸转运。
(K–L) 体内¹³C-脂肪酸示踪分析肿瘤细胞脂肪酸来源。
(M–O) TREM2缺失对巨噬细胞脂肪酸释放、肿瘤细胞脂质积累及脂肪酸依赖性的影响。
(P–Q) 体内脂肪酸示踪分析TREM2缺失或抑制后的脂肪酸转运变化。
FIG 4

Figure 4. TREM2⁺ LAM促进含脂肪酸EV产生并诱导肿瘤细胞组蛋白乙酰化
(A–C) TREM2缺失与对照BMDMs来源EV的形态及标志蛋白分析。
(D) 巨噬细胞来源EV数量及游离脂肪酸含量分析。
(E) EV处理对肿瘤细胞脂滴积累的影响。
(F–H) CD63过表达及凋亡细胞处理对EV脂肪酸含量和肿瘤细胞脂质积累的影响。
(I) 不同长度脂肪酸在EV中的组成差异。
(J–L) ¹³C脂肪酸示踪结合乙酰化蛋白质组学分析,追踪脂肪酸碳源进入肿瘤细胞组蛋白乙酰化。
(M–N) 巨噬细胞来源EV及体内肿瘤组织中H3K36ac、H3K37ac和H4K12ac水平分析。
FIG 5

Figure 5. TREM2缺失通过表观遗传抑制HCC免疫抑制信号,使肿瘤重新敏感于抗PD-1治疗
(A–B) TREM2髓系细胞特异性敲除联合抗PD-1治疗的HCC模型及肿瘤生长分析。
(C–E) 肿瘤细胞脂质积累、乙酰辅酶A及H3K36ac水平分析。
(F–H) RNA-seq和H3K36ac ChIP-seq分析肿瘤中的基因表达及表观遗传变化。
(I–J) 肿瘤组织TGF-β1、VEGF水平及其与肿瘤浸润淋巴细胞的相关性。
(K–M) 肿瘤浸润淋巴细胞及细胞毒性淋巴细胞比例分析。
(N) 抗PD-1治疗后TREM2缺失肿瘤中干扰素-γ反应通路富集分析。
FIG 6

Figure 6. TREM2⁺ LAM在HCC患者免疫抑制和脂肪酸富集肿瘤微环境中空间聚集
(A–B) ICB无应答HCC患者肿瘤组织的空间转录组及多重免疫荧光分析流程。
(C) 根据与TREM2⁺ LAM距离不同的细胞区域,分析肿瘤细胞和NK/T细胞功能通路变化。
(D–F) HCC组织中脂滴、死亡细胞与TREM2⁺ LAM的空间分布及相关性。
(G–I) 肿瘤微环境细胞邻域及肿瘤细胞脂肪酸利用通量分析。
(J–K) TREM2⁺ LAM富集区域肿瘤细胞H3K36ac及相关空间共定位分析。
(L–N) TREM2⁺ LAM富集与非富集区域中CD8⁺ T细胞、CD4⁺ T细胞和NK细胞浸润比较。
FIG 7

Figure 7. 靶向TREM2⁺ LAM具有潜在的转化价值并增强ICB治疗效果
(A–B) 自发性HCC模型中抗TREM2联合抗PD-1治疗及肿瘤生长分析。
(C–E) 治疗后肿瘤H3K36ac、脂质积累及乙酰辅酶A水平变化。
(F) LUAD和PDAC患者中TREM2⁺ LAM、脂肪酸转运、efferocytosis及肿瘤脂肪酸利用通量分析。
(G) TCGA多癌种队列中TREM2高低表达肿瘤的脂肪酸利用差异。
(H) TNBC和NSCLC免疫治疗队列中TREM2⁺ LAM、脂肪酸代谢活性及ICB疗效分析。
(I) ccRCC患者中TREM2表达、肿瘤脂肪酸利用通量及总体生存的关系。
示意图

研究总结:
肿瘤细胞能够适应营养匮乏的肿瘤微环境(TME),但这种代谢可塑性如何驱动其适应免疫检查点阻断(ICB)治疗,目前仍不清楚。本研究发现,肿瘤细胞可利用**巨噬细胞胞葬作用(efferocytosis)**获得代谢支持,从而抵消免疫检查点靶向治疗的作用。
对ICB耐药肝细胞癌(HCC)患者连续肿瘤活检样本进行分析发现,在富含脂质的肿瘤微环境中,肿瘤细胞的脂肪酸摄取(FAU)显著增强,同时TREM2⁺脂质相关巨噬细胞(LAMs)明显增多。髓系细胞特异性Trem2缺失或使用抗TREM2抗体,均可阻断ICB耐药肿瘤细胞依赖脂肪酸的能量产生,并通过重塑肿瘤微环境的表观遗传状态,使肿瘤重新对ICB治疗敏感。
机制研究表明,TREM2⁺ LAMs通过胞葬作用产生的细胞外囊泡,将脂肪酸重新递送给肿瘤细胞,从而促进与H3K36乙酰化相关的表观遗传激活,并增强MYC和TGF-β信号通路,最终帮助肿瘤细胞实现免疫逃逸。单细胞空间分析进一步支持了TREM2⁺ LAMs介导的胞葬作用参与ICB耐药HCC表观遗传免疫逃逸这一机制。
此外,在多种人类癌症中,TREM2⁺ LAMs的高浸润均与肿瘤细胞脂肪酸摄取增强及ICB治疗不应答相关。
综上,本研究揭示了“TREM2⁺ LAMs–胞葬作用–脂肪酸转运–肿瘤代谢适应”这一促进ICB耐药的新机制,并提示TREM2⁺ LAMs介导的脂质代谢可能是联合免疫检查点治疗的共同代谢脆弱点。