真正拉开Figure差距的,往往不是数据!!!
本期跟大家分享的是发表在 Cancer cell 上的题目为 Cancer stem cells orchestrate immune evasion through extracellular vesicle-mediated non-canonical signaling pathways 的研究论文的排版和配色!
科研配色拆解见: 跟着顶刊学配色 77 | Cancer Cell

Fan G, Jin J, Wang J ...
Cancer stem cells orchestrate immune evasion through extracellular vesicle-mediated non-canonical signaling pathways
Cancer Cell, 2026; 44, 1160-1178.e8
FIG. 1

CSCs周围Treg浸润增加并形成免疫抑制微环境
(A) 基于单细胞蛋白组学分析TNBC患者肿瘤微环境,并按CSC水平分组。
(B–C) CSC高、低表达组活细胞的细胞亚群分析及组成比较。
(D–G) TNBC组织多重免疫组化分析,检测CSC及CD4⁺FOXP3⁺ Treg分布,并分析二者的表达相关性及空间距离关系。
(H) CSC阳性或阴性肿瘤异种移植模型及实验流程。
(I–L) 不同CSC来源肿瘤中CD4⁺ Treg、CD8⁺ T细胞及CD103⁺ Treg的比例分析。
(M) 不同CSC表达状态下肿瘤、脾脏及淋巴结中CD4⁺ Treg水平。
(N–O) 不同CSC状态对肿瘤生长及肺转移的影响。
FIG 2

CSC来源的细胞外囊泡(EVs)促进CD4⁺ Treg富集
(A–B) CSC来源条件培养基处理PBMCs后免疫细胞群的单细胞分析。
(C–E) CSC来源条件培养基对CD4⁺/CD8⁺ T细胞及Treg、Th1、Th2和Th17细胞比例的影响。
(F) CSC来源条件培养基对诱导型Treg(iTreg)相关蛋白表达的影响。
(G–J) CSC来源EVs处理后T细胞亚群组成及CD4⁺FOXP3⁺ Treg比例分析。
FIG 3

TSPAN8富集的EVs促进Treg分化和克隆扩增
(A–D) TSPAN8富集EVs促进初始CD4⁺ T细胞向FOXP3⁺/CD25⁺ Treg分化。
(E–G) 不同来源EVs对iTreg增殖的影响。
(H) EVs对iTreg凋亡的影响。
(I–J) EVs处理后iTreg相关功能标志物表达变化。
FIG 4

EV膜上的TSPAN8驱动Treg介导的免疫逃逸
(A–C) EVs进入iTreg及其与T细胞的相互作用分析。
(D) 乳腺癌组织中TSPAN8阳性细胞与T细胞的分布分析。
(E) EVs、TSPAN8抗体或TSPAN8重组蛋白对CD4⁺FOXP3⁺ Treg分化的影响。
(F) 不同处理后iTreg对CD8⁺ T细胞增殖的抑制能力。
(G) TSPAN8阳性脂质体的构建示意图。
(H–I) TSPAN8阳性脂质体促进Treg分化及增强Treg免疫抑制功能。
FIG 5

CD103是TSPAN8的高亲和力受体,并调控Treg免疫突触形成
(A–D) 通过质谱、Co-IP和GST pull-down鉴定并验证TSPAN8与CD103的直接相互作用。
(E–H) CD103干预对TSPAN8⁺ EVs诱导Treg分化及免疫抑制功能的影响。
(I–K) 交联质谱及分子对接分析TSPAN8-CD103的结合模式。
(L–M) TSPAN8与CD103相互作用结构域分析。
(N) TSPAN8/CD103相互作用相关蛋白表达分析。
FIG 6
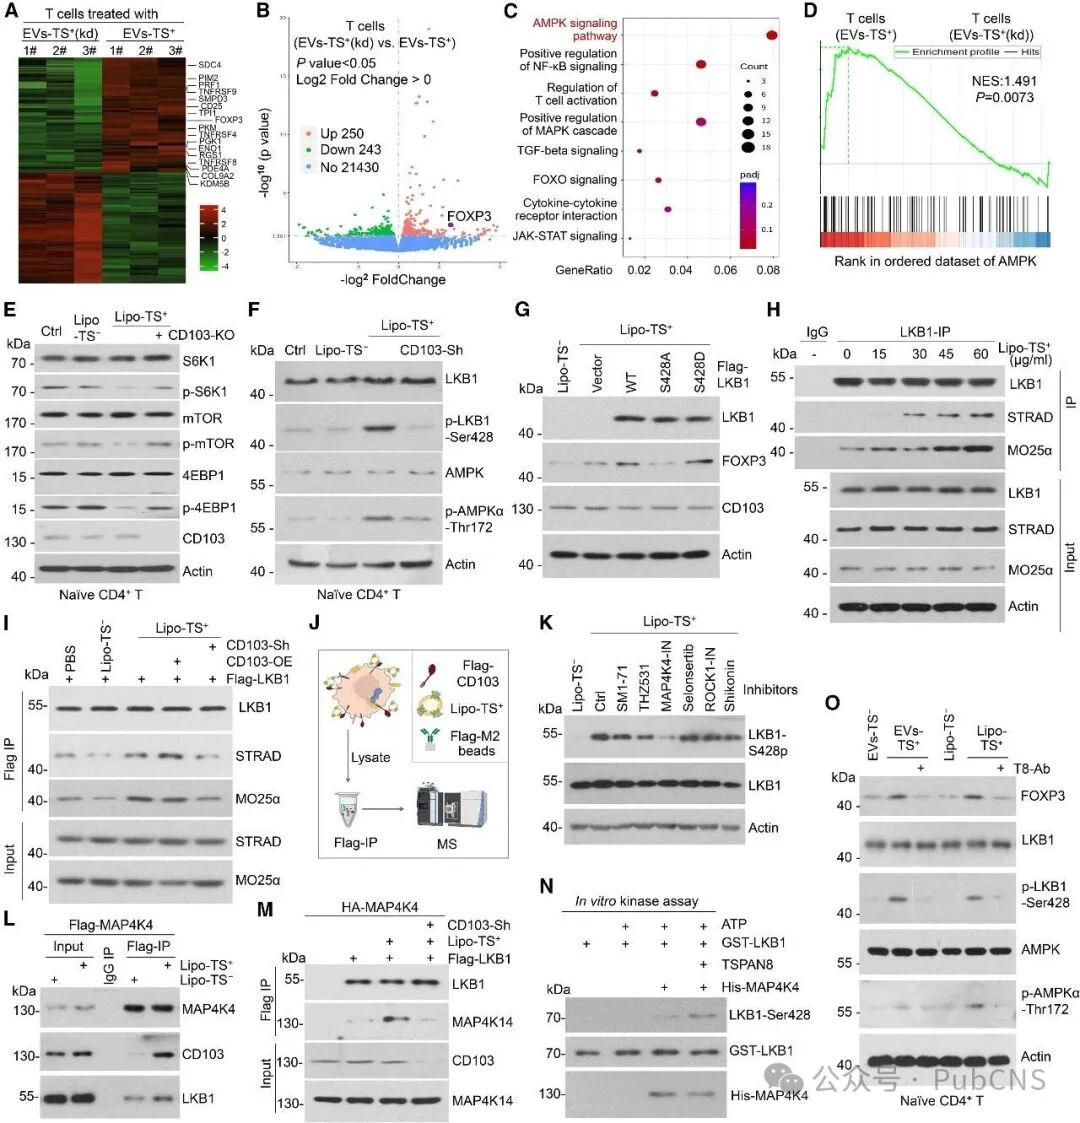
TSPAN8富集EVs激活LKB1/AMPK代谢信号轴,驱动T细胞表型转化
(A–D) TSPAN8富集EVs处理T细胞后的转录组及KEGG、GSEA通路分析。
(E–F) CD103缺失或敲低对TSPAN8阳性脂质体诱导信号变化的影响。
(G–I) TSPAN8/CD103对LKB1及其相关信号调控的分析。
(J–M) CD103相互作用蛋白筛选及LKB1相关信号通路验证。
(N) MAP4K4对LKB1磷酸化的体外验证。
(O) 不同EVs或TSPAN8抗体处理后T细胞代谢信号变化。
FIG 7

CD103⁺FOXP3⁺ Treg构成独特的组织驻留免疫抑制亚群并促进肿瘤进展
(A–D) 乳腺癌组织中CD103⁺FOXP3⁺ Treg的分布及不同分子亚型中的比例,并分析其与患者生存的关系。
(E–G) 血浆EV中TSPAN8水平及其与TNM分期和患者生存的关系。
(H) 不同TSPAN8状态肿瘤异种移植模型的治疗方案。
(I–J) TSPAN8阳性脂质体或CD25抗体对肿瘤生长的影响。
(K–L) 肿瘤中CD103⁺FOXP3⁺ Treg及CD8⁺ T细胞浸润分析。
(M–N) 不同处理对肺转移的影响。
FIG 8

TSPAN8富集EVs促进肿瘤内CD103⁺FOXP3⁺ Treg积累
(A) PY8119/4T1异种移植模型及EVs、TSPAN8抗体和PD-1抗体治疗方案。
(B) TSPAN8抗体在肿瘤组织中的分布分析。
(C–F) 不同处理对肿瘤生长及肺转移的影响。
(G–J) 肿瘤组织中CD4⁺FOXP3⁺ Treg、CD103⁺FOXP3⁺ Treg及CD8⁺ T细胞浸润分析。
(K–L) 乳腺癌队列中CD44⁺TSPAN8⁺CD24⁻ CSCs与CD103⁺FOXP3⁺ Treg的比例及相关性分析。
(M–N) 接受新辅助免疫治疗的乳腺癌患者中,CSCs与CD103⁺FOXP3⁺ Treg的空间分布及其关系。
(O–P) 不同CSCs丰度肿瘤的治疗反应及病理完全缓解率比较。
示意图

研究总结
肿瘤细胞可通过重塑肿瘤微环境(TME)来逃避免疫攻击。研究者利用多重单细胞蛋白组学分析未经治疗的三阴性乳腺癌(TNBC)组织,发现癌症干细胞(CSCs)可通过细胞外囊泡(EVs)介导的旁分泌信号,促进调节性T细胞(Tregs)的分化和扩增。
研究进一步发现,CSC来源EV膜上的跨膜蛋白TSPAN8可与T细胞表面的CD103(整合素αEβ7)结合,激活LKB1-STRAD-MO25复合物,并进一步促进LKB1和AMPKα磷酸化,增强FOXP3表达。FOXP3又可促进CD103表达,由此形成正反馈环路,推动CD103⁺FOXP3⁺免疫抑制性Treg持续扩增,并形成有利于肿瘤生长的免疫抑制微环境。
这一机制依赖于EV膜表面的TSPAN8与T细胞受体直接作用,而不依赖于传统的EV内容物进入受体细胞。
在动物模型中,利用单克隆抗体中和TSPAN8⁺ EVs可增强抗PD-1治疗效果,提示靶向CSC来源EV-TSPAN8/CD103信号轴可能同时干预肿瘤干细胞和免疫抑制微环境,尤其适用于TSPAN8⁺ CSCs较高的TNBC患者。